Ver4.0 ✂️ 유전자 가위 크리스퍼(CRISPR)는 어떻게 DNA를 정확히 찾아 자를까? 분자 메커니즘 이야기 🧬
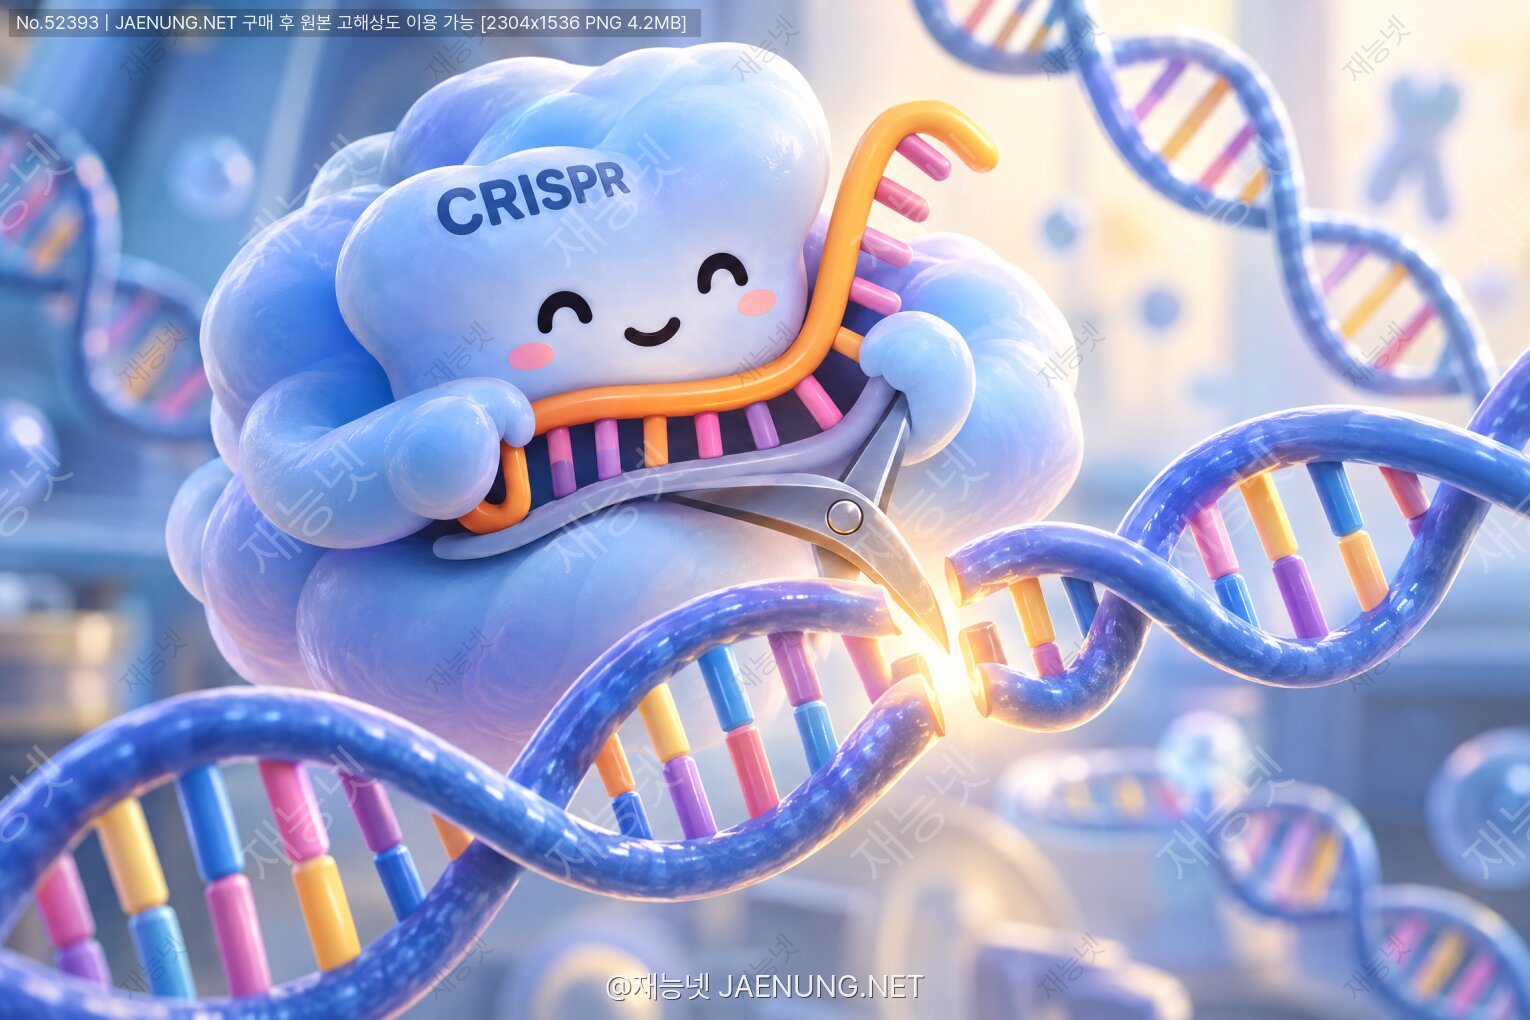
✂️ 유전자 가위 크리스퍼(CRISPR)는 어떻게 DNA를 정확히 찾아 자를까? 분자 메커니즘 이야기 🧬
"세균이 바이러스랑 싸우려고 만든 면역 기억장치"가 어쩌다 인류의 유전자 편집 도구가 됐을까?
오늘은 크리스퍼가 진짜로 DNA를 자르는 순간을 초고배율로 들여다보자.
🍜 시작은 요구르트 공장이었다 (진짜임)
친구야, 크리스퍼 얘기하면 다들 영화 가타카나 디자이너 베이비부터 떠올리는데,
사실 이 기술의 출발점은 요구르트와 치즈 공장이었어. 농담 아니고 진짜.
1987년, 일본 오사카대의 이시노 요시즈미 연구팀이 대장균 유전체를 들여다보다가
이상한 걸 발견해. 똑같은 길이의 짧은 반복서열(약 29염기)이 계속 나오는데,
그 사이사이에 전혀 다른 서열(약 32염기)이 끼어 있는 거야.
반복 – 낯선서열 – 반복 – 또 다른 낯선서열 – 반복 …
마치 책갈피 사이에 끼워둔 메모 같은 구조.
당시엔 "이게 뭐지?" 하고 넘어갔어. 기능을 몰랐거든.
2002년에 이 구조에 이름이 붙는데, 그게 바로 CRISPR야.
Clustered Regularly Interspaced Short Palindromic Repeats,
번역하면 "규칙적인 간격으로 뭉쳐 있는 짧은 회문(回文) 반복서열".
이름이 길지? 그래서 다들 그냥 "크리스퍼"라고 불러.
🧀 덴마크 유산균 회사의 발견
2007년, 덴마크의 발효식품 기업 다니스코(Danisco)의 연구원들이
골치를 앓고 있었어. 요구르트를 만드는 유산균 Streptococcus thermophilus가
박테리오파지(세균을 잡아먹는 바이러스)에 감염되면 발효가 망하거든.
공장 입장에선 수십억 손실이야.
그런데 바이러스 공격에서 살아남은 유산균들을 분석해보니,
CRISPR 구간에 새로운 "메모"가 추가되어 있었어.
그 메모의 정체는? 자기를 공격했던 바이러스의 DNA 조각이었지.
💡 결론이 명확해졌다:
CRISPR는 세균의 적응 면역 시스템이자, 지명수배 사진첩이다.
한 번 당한 바이러스의 얼굴(서열)을 게놈에 기록해뒀다가,
다음에 또 오면 그 사진을 들고 대조해서 바로 목을 자른다.
이게 왜 대단하냐면, "특정 DNA 서열을 알아보고 자른다"는 기능은
생명공학자들이 수십 년간 목말라하던 바로 그것이었거든.
세균이 이미 30억 년 전부터 쓰고 있었던 거야. 우리가 늦게 알아챈 거지.
🔬 크리스퍼 시스템의 3대 부품
자, 이제 본론. 크리스퍼-Cas9 시스템은 딱 세 덩어리로 이해하면 돼.
복잡해 보이지만 비유하면 "내비게이션 + 가위 + 주차 표지판"이야.
1️⃣ Cas9 — 실제 가위 역할의 단백질
Cas는 "CRISPR-associated"의 줄임말이야. Cas9은 그중 9번.
화농성연쇄상구균(Streptococcus pyogenes)에서 온 SpCas9이 가장 유명하고,
아미노산 약 1,368개로 이루어진 꽤 덩치 큰 단백질이야.
Cas9 안에는 진짜 칼날 역할을 하는 두 개의 도메인이 있어.
| 도메인 | 자르는 가닥 | 특징 |
|---|---|---|
| HNH | 가이드 RNA와 결합한 가닥 (target strand) | ββα-Me 폴드, 금속이온 1개 사용 |
| RuvC | 반대편 가닥 (non-target strand) | RNase H 유사 폴드, 2가 금속이온 촉매 |
두 칼날이 동시에 양쪽 가닥을 자르니까 결과는
DSB(Double-Strand Break, 이중가닥 절단)가 돼.
그것도 대부분 끝이 삐죽하지 않은 뭉툭한 절단면(blunt end)으로.
2️⃣ 가이드 RNA — 주소를 알려주는 내비게이션
원래 세균 안에서는 두 조각의 RNA가 필요해.
crRNA (CRISPR RNA): 약 20염기짜리 "지명수배 사진". 표적 DNA와 짝을 맞출 부분.
tracrRNA (trans-activating crRNA): crRNA와 짝을 이뤄 Cas9에 장착되게 돕는 "손잡이".
2012년, 제니퍼 다우드나와 에마뉘엘 샤르팡티에 팀이
"이 둘을 하나로 붙여버리면 어떨까?" 하고 연결한 게
sgRNA(single guide RNA)야. 이 단순화가 크리스퍼를 실험실 표준 도구로 만든 결정적 한 방이었고,
두 사람은 2020년 노벨 화학상을 받았지.
3️⃣ PAM — 없으면 아예 시작도 못 하는 표지판
여기가 크리스퍼 메커니즘의 진짜 핵심이자,
많은 사람들이 그냥 넘어가는 부분이야.
PAM(Protospacer Adjacent Motif)은 표적 서열 바로 옆(3' 방향)에 있어야 하는
짧은 서열이야. SpCas9의 경우 5'-NGG-3' (N은 아무 염기나, 뒤에 G 두 개).
🤔 왜 굳이 PAM이 필요할까?
세균 입장에서 생각해봐. CRISPR 구간에는 바이러스 서열 조각이 그대로 저장되어 있잖아?
그럼 Cas9이 자기 자신의 CRISPR 저장고를 공격해버릴 위험이 있어. 자가면역이지.
그런데 세균의 CRISPR 저장 구간에는 PAM이 없어.
반면 실제 침입한 바이러스 DNA에는 PAM이 붙어 있지.
즉 PAM은 "이건 남의 DNA다"라는 신분 확인 도장인 셈이야.
그리고 공학적으로 보면, PAM은 검색 속도를 극적으로 높이는 인덱스이기도 해.
인간 게놈이 30억 염기쌍인데, 20염기 서열을 하나하나 다 맞춰보려면 계산량이 미쳐.
대신 "NGG 세 글자"만 먼저 훑으면 후보가 수백만 개로 줄고,
거기서만 정밀 대조를 하면 되니까 훨씬 효율적이지.
데이터베이스에서 인덱스 스캔 먼저 하고 풀스캔 안 하는 거랑 똑같은 원리야.
⚙️ DNA를 자르는 순간, 6단계 슬로우 모션
자 이제 진짜 본론. Cas9이 세포 안에 들어간 뒤 어떤 일이 벌어지는지
초당 프레임 단위로 쪼개보자.
STEP 1. 무작위로 들이받으며 돌아다닌다
Cas9-sgRNA 복합체는 처음부터 목적지를 아는 게 아니야.
핵 안을 3차원 확산(3D diffusion)으로 떠돌면서 DNA에 무작위로 충돌해.
단일분자 실험(single-molecule imaging) 결과를 보면
대부분의 접촉은 1초도 안 되어 떨어져 나가. 대략 밀리초 수준.
STEP 2. PAM이 있으면 브레이크를 밟는다
Cas9의 PI 도메인(PAM-interacting domain)에는
아르기닌 잔기 두 개(Arg1333, Arg1335)가 있는데,
이게 NGG의 구아닌 두 개와 수소결합을 형성해.
쉽게 말해 "G G 두 글자를 손가락으로 더듬어 확인"하는 거야.
PAM이 없으면? 그냥 지나가. 아무리 서열이 완벽히 일치해도 안 자른다.
이게 크리스퍼 설계의 첫 번째 제약 조건이 되지.
"자르고 싶은 자리가 있는데 근처에 NGG가 없다" → 설계 불가.
그래서 SaCas9(NNGRRT), Cas12a(TTTV) 같은 다른 PAM을 쓰는 변종들이 계속 개발되는 거고.
STEP 3. 이중나선을 살짝 벌린다 (R-loop)
PAM에 붙은 Cas9은 바로 옆의 DNA를 비틀어서 국소적으로 풀어.
이때 PAM 바로 옆 첫 번째 염기쌍이 뒤집히는데,
이걸 "phosphate lock loop"가 고정해줘.
그러면 한 가닥은 sgRNA와 짝을 짓고, 나머지 한 가닥은 홀로 떠 있게 돼.
이 RNA:DNA 혼성 이중체 + 밀려난 단일가닥 DNA 구조가 바로 R-loop야.
STEP 4. 지퍼처럼 20염기를 맞춰본다
여기가 정확도의 핵심. 짝맞춤은 무작위가 아니라 방향성이 있어.
PAM에 가까운 쪽부터 지퍼 올리듯 순차적으로 진행돼.
🎯 Seed 영역 (시드 영역)
PAM에서 가장 가까운 8~12 염기를 seed라고 불러.
여기서 하나라도 안 맞으면 지퍼가 더 안 올라가고 즉시 이탈해.
반대로 PAM에서 먼 쪽(distal, 5' 끝) 1~3개 정도의 미스매치는
그냥 무시하고 지나가버릴 수 있어.
👉 이게 바로 오프타깃(off-target) 절단이 생기는 근본 원인이야.
STEP 5. 단백질이 몸을 비튼다 (형태 변화)
20염기가 다 맞아떨어지면, Cas9 단백질에 대규모 구조 변화가 일어나.
이게 정말 우아한 부분인데 —
평소 HNH 도메인은 칼날이 DNA에서 멀찍이 떨어진 위치에 있어.
그런데 완전 짝맞춤이 확인되면 HNH가 수십 옹스트롬 거리를 회전 이동해서
표적 가닥의 절단 위치에 정확히 도킹해.
그리고 HNH의 이 움직임이 RuvC까지 알로스테릭하게 활성화시켜.
즉 "한쪽 칼날이 준비되면 다른 칼날도 자동으로 켜지는" 연동 구조야.
⚙️ 공학적으로 보면 이건 "다중 안전장치"야.
① PAM 확인 → ② seed 확인 → ③ 전체 짝맞춤 확인 → ④ 형태 변화 → ⑤ 절단
총 4단계의 검문소를 통과해야만 칼이 나간다.
산업 안전설계에서 말하는 인터록(interlock) 개념이랑 똑같지?
세균이 이걸 자연선택만으로 만들어냈다는 게 놀랍지 않아?
STEP 6. 칼질 — 정확히 PAM 3염기 앞
드디어 절단. 위치는 PAM에서 3~4 염기 떨어진 지점.
두 도메인 모두 금속이온 의존성 가수분해(metal-dependent hydrolysis)로
DNA의 인산디에스테르 결합을 끊어.
5'-...NNNNNNNNNNNNNNNNN ✂ NNN-NGG-3'   ← non-target (RuvC)
3'-...NNNNNNNNNNNNNNNNN ✂ NNN-NCC-5'   ← target (HNH)

                    ↑
            PAM 상류 3bp 지점
            → blunt end DSB 생성
재밌는 사실: 자른 뒤에도 Cas9은 바로 안 떠나.
시험관 실험에서는 잘린 DNA를 붙들고 수 시간씩 머물러 있는 게 관찰됐어.
그래서 Cas9은 엄밀히 말해 "효소"라기보다 단일 회전수 효소(single-turnover enzyme)에 가까워.
한 번 쓰고 한참 붙어 있는 셈이지.
🩹 자르기만 하면 끝? 진짜 편집은 "수리" 단계에서
여기서 많은 사람이 오해해.
크리스퍼는 유전자를 "고치는" 도구가 아니야. "자르는" 도구지.
실제로 유전자를 바꾸는 건 세포 자신의 DNA 수리 시스템이야.
우리는 그 수리 과정을 유도하고 이용할 뿐이지.
🔧 경로 A: NHEJ — 급한 대로 이어붙이기
NHEJ(Non-Homologous End Joining, 비상동 말단 연결)은
세포가 가장 많이 쓰는 응급 수리법이야. 세포 주기 전 구간에서 작동하고, 빠르지.
근데 이게 부정확해. 끊어진 양끝을 그냥 붙이는데,
그 과정에서 염기 몇 개가 빠지거나(deletion) 끼어들어(insertion).
이걸 합쳐서 indel이라고 불러.
💥 indel의 파괴력
DNA는 3염기가 한 세트(코돈)로 아미노산 하나를 지정하잖아?
그런데 1개나 2개가 빠지면 프레임시프트(frameshift)가 일어나.
원본: ATG CAT GGA TCC → Met-His-Gly-Ser
1개 삭제: ATG ATG GAT CC… → 완전히 다른 단백질 + 조기 종결
결과적으로 그 유전자는 기능을 잃어. 이게 유전자 녹아웃(knockout)이야.
"이 유전자 없애면 무슨 일 생기지?" 연구할 때 가장 많이 쓰는 방법.
🔧 경로 B: HDR — 설계도 보고 정밀 수리
HDR(Homology-Directed Repair, 상동재조합 수리)은
비슷한 서열을 템플릿 삼아 정확하게 복원하는 방식이야.
우리가 여기에 일부러 원하는 서열이 담긴 DNA 조각을 같이 넣어주면?
세포가 그걸 설계도로 착각하고 그대로 베껴 써. 🎯
이게 정밀 유전자 교정의 원리야. 점돌연변이 하나를 정상으로 되돌리는 것도 가능.
⚠️ 근데 HDR엔 큰 약점이 있어
HDR은 S기와 G2기(DNA 복제 전후)에만 작동해.
즉 세포가 활발히 분열할 때만 가능하다는 뜻이야.
문제는 신경세포, 심근세포, 망막세포 같은 분열하지 않는 세포들.
여기선 HDR이 거의 안 돌아가고 NHEJ만 일어나.
효율도 보통 NHEJ 대비 훨씬 낮아서, 세포 타입에 따라 수 %에 그치는 경우도 흔해.
🔧 경로 C: MMEJ, SSA — 그 외 조연들
실제 세포 안에서는 MMEJ(microhomology-mediated end joining)처럼
짧은 상동 구간을 이용해 이어붙이는 경로도 작동해.
이 경로는 예측 가능한 결실 패턴을 만들어서,
최근엔 "어떤 indel이 나올지 미리 예측하는 AI 모델"까지 나와 있어.
재능넷 지식인의 숲에서 다루는 AI × 바이오 융합 주제와도 딱 맞닿는 지점이지.
🎯 오프타깃 문제 — 크리스퍼의 아킬레스건
자, 아까 seed 영역 얘기 기억나지?
PAM에서 먼 쪽 미스매치는 대충 넘어간다고 했잖아.
그 말은 엉뚱한 곳을 자를 수 있다는 뜻이야.
인간 게놈은 30억 염기쌍. 20염기 서열과
3~4개만 다른 유사 서열은 통계적으로 수십~수백 군데 존재할 수 있어.
거기서 잘못 자르면? 암 억제 유전자가 망가질 수도 있고,
염색체 대규모 재배열이 생길 수도 있어.
🛡️ 해결책 1: 더 똑똑한 Cas9 만들기
| 변종 | 전략 | 효과 |
|---|---|---|
| eSpCas9 | 비표적 가닥과의 결합을 약화시킴 | 완벽 매치일 때만 안정화 |
| SpCas9-HF1 | DNA 골격과의 과잉 수소결합 제거 | 결합 에너지 여유분 삭감 |
| HypaCas9 | REC3 도메인 조정 | 구조 변화 문턱값 상승 |
공통 아이디어가 재밌어. "Cas9이 원래 DNA를 너무 꽉 잡는다"는 거야.
결합력이 과해서 미스매치가 있어도 버텨버리거든.
그래서 일부러 붙는 힘을 살짝 약하게 만들어서,
완벽하게 맞을 때만 간신히 활성화되게 튜닝한 거지.
회로 설계에서 노이즈 마진 잡는 거랑 완전 같은 발상이야.
🛡️ 해결책 2: 니카아제 페어링
Cas9 nickase(nCas9)는 두 칼날 중 하나를 고장 낸 버전이야.
(예: D10A 돌연변이 → RuvC 비활성, H840A → HNH 비활성)
이러면 한 가닥만 자르는 닉(nick)이 생기는데,
단일가닥 손상은 세포가 거의 오류 없이 잘 고쳐.
그래서 서로 다른 두 개의 gRNA로 양쪽 가닥에 각각 닉을 내면,
그 두 지점이 가까울 때만 결과적으로 DSB가 생겨.
👉 인식해야 할 서열이 20bp에서 실질적으로 40bp로 늘어나는 효과!
특이성이 수십~수백 배 올라가지.
🛡️ 해결책 3: 자르지 않는 편집 (차세대)
염기 편집기 (Base Editor)
dCas9 또는 nCas9에 탈아미노효소를 붙인 것.
DNA를 자르지 않고 화학적으로 C→T, A→G 같은 한 글자 변환만 수행.
DSB가 없으니 indel 위험이 크게 줄어.
프라임 편집기 (Prime Editor)
nCas9 + 역전사효소 조합. pegRNA 안에 편집 정보 자체를 담아서
"검색 후 치환(search-and-replace)"을 수행해.
삽입·삭제·모든 종류의 치환이 가능하고, HDR 없이도 정밀 편집이 돼.
🧰 Cas9 말고도 형제들이 많다
✂️ Cas12a — 계단형으로 자르는 사촌
Cas12a는 Cas9과 몇 가지가 확 달라.
첫째, tracrRNA가 필요 없어. crRNA 하나로 끝.
게다가 Cas12a는 스스로 자기 crRNA 배열을 잘라 정리까지 해.
그래서 여러 표적을 한 번에 편집하는 멀티플렉싱에 유리하지.
둘째, 계단형 절단면(4~5nt 돌출)을 만들어.
끈적한 끝(sticky end)이라 특정 서열을 끼워넣을 때 방향성 조절이 쉬워.
셋째, PAM이 TTTV라서 AT가 많은 영역을 공략할 수 있어.
식물 유전체나 특정 조절부위 편집에서 Cas9의 빈틈을 메워주지.
🦠 Cas13 — RNA를 자르는 특이한 친구
Cas13은 DNA가 아니라 RNA를 표적으로 해.
게놈을 영구적으로 바꾸지 않으니 "되돌릴 수 있는 편집"이 가능하다는 게 매력.
그리고 재밌는 특성이 있는데, 표적 RNA를 자른 뒤
주변의 아무 RNA나 마구 잘라대는 부수적 활성(collateral activity)을 보여.
얼핏 단점 같지만, 이걸 거꾸로 이용한 게 SHERLOCK 같은 분자진단 기술이야.
형광 리포터 RNA를 같이 넣어두면, 표적이 검출되는 순간 빛이 나거든.
🚚 "그래서 이걸 세포 안에 어떻게 넣는데?"
메커니즘을 아무리 잘 알아도, 전달(delivery)이 안 되면 무용지물이야.
실제로 바이오 융합공학 현장에서 가장 머리 아픈 부분이 바로 여기야.
| 방식 | 형태 | 장점 | 한계 |
|---|---|---|---|
| AAV 벡터 | DNA | 조직 특이성 우수, 체내 전달 강점 | 적재 용량 약 4.7kb로 제한 |
| 렌티바이러스 | DNA | 용량 크고 안정적 발현 | 게놈 삽입 위험, 장기 발현→오프타깃↑ |
| 지질나노입자(LNP) | mRNA | 일시적 발현, 비바이러스, 대량생산 용이 | 주로 간에 집중, 표적 조직 확장 과제 |
| RNP 직접 전달 | 단백질+RNA | 즉시 작동 후 빠르게 분해 → 오프타깃 최소 | 체내 전달 난이도 높음 |
| 전기천공법 | 다양 | 세포 밖(ex vivo) 편집에 최적 | 체내 적용 불가 |
🧠 핵심 통찰
"오래 발현될수록 좋다"는 생각은 크리스퍼에선 틀려.
Cas9이 세포 안에 오래 남아 있을수록 엉뚱한 곳을 자를 기회도 늘어나.
그래서 최근 트렌드는 "확 켰다가 빨리 끄기"야.
mRNA나 RNP 형태가 각광받는 이유가 정확히 이거지.
반도체로 치면 펄스 구동 개념이라고 보면 돼.
🏥 실제로 쓰이고 있다 — 이미 현실
"이론은 알겠는데 실제로 되긴 해?" 싶지?
2023년 12월, 역사적인 일이 있었어.
🎉 Casgevy (exagamglogene autotemcel)
세계 최초로 규제 승인을 받은 CRISPR 기반 치료제.
영국 MHRA를 시작으로 미국 FDA 승인까지 이어졌어.
대상: 겸상적혈구빈혈증, 베타지중해빈혈
원리: 환자의 조혈모세포를 꺼내서(ex vivo),
BCL11A 유전자의 적혈구 특이적 인핸서를 크리스퍼로 잘라 무력화.
그러면 성인이 되며 꺼졌던 태아 헤모글로빈(HbF) 스위치가 다시 켜져.
망가진 성인 헤모글로빈 대신 태아형이 산소를 나르는 거지.
💡 발상이 기가 막히지? 고장 난 유전자를 고치는 게 아니라,
백업 시스템의 전원 스위치를 다시 켜는 우회 전략이야.
🌾 의료 말고도 넓은 무대
농업: 갈변 억제 양송이버섯, 고올레산 대두, 가바 함량을 높인 토마토 등.
외래 유전자를 넣지 않는 편집 작물은 일부 국가에서 GMO와 다른 규제를 적용받아.
진단: SHERLOCK, DETECTR 같은 Cas 기반 핵산 진단.
고가 장비 없이 시각적 판독이 가능해 현장 진단(POCT)에 유리해.
기초연구: CRISPR 스크리닝. 수만 개 유전자를 하나씩 녹아웃시키며
"어떤 유전자가 항암제 내성에 관여하나?"를 대규모로 탐색.
생태·방제: 유전자 드라이브를 이용한 말라리아 매개 모기 개체군 조절 연구.
다만 생태계 파급 효과 때문에 극도로 신중하게 다뤄지고 있어.
⚖️ 넘어야 할 선 — 기술보다 어려운 질문
2018년, 중국의 한 연구자가 CCR5 유전자를 편집한 쌍둥이를 태어나게 했어.
전 세계 과학계가 거세게 비판했고, 해당 연구자는 실형을 선고받았지.
왜 그렇게까지 문제였을까? 핵심은 생식세포(germline) 편집이라는 점이야.
🚨 체세포 편집 vs 생식세포 편집
체세포 편집: 환자 본인의 특정 세포만 바꿈. 자손에게 전달 안 됨.
→ 일반 의약품과 유사한 윤리적 틀로 접근 가능. (Casgevy가 여기)
생식세포 편집: 정자·난자·수정란을 편집. 모든 세포와 후손에게 영구 전달.
→ 당사자 동의 불가, 되돌릴 수 없음, 예측 못 한 부작용이 세대를 넘어 누적.
현재 대다수 국가에서 임상 적용이 법적으로 금지돼 있어.
기술적인 미해결 과제도 여전히 많아.
① 모자이시즘 — 배아 편집 시 일부 세포만 편집되어 개체 안에 서로 다른 유전형이 섞이는 현상.
② 대규모 결실 — 예상보다 훨씬 긴 구간이 통째로 사라지거나 염색체가 소실되는 사례 보고.
③ p53 경로 — DSB는 세포에게 심각한 손상 신호라, p53이 활발한 정상 세포는 편집 효율이 떨어져.
역으로 p53이 이미 망가진 세포가 선택적으로 살아남을 위험도 논의되고 있어.
④ 면역 반응 — Cas9은 세균 단백질이라, 이미 항체를 가진 사람이 상당수 존재해.
"할 수 있다"와 "해도 된다" 사이의 거리는,
기술이 발전할수록 오히려 더 멀어져야 한다.
🎓 정리 — 30초 요약
1. 크리스퍼는 원래 세균의 바이러스 면역 기억 시스템이었다.
2. 가이드 RNA가 주소를 알려주고, Cas9이 가위 역할을 한다.
3. 가장 먼저 PAM(NGG)을 찾는다. 없으면 아예 시작조차 안 한다.
4. PAM 옆에서 이중나선을 풀고 R-loop를 만들며, PAM 쪽부터 지퍼처럼 20염기를 맞춰본다.
5. 완전히 맞으면 HNH가 회전 이동해 칼날이 정렬되고, RuvC도 연동 활성화된다.
6. PAM 3염기 앞에서 양쪽 가닥을 뭉툭하게 자른다.
7. 진짜 편집은 세포의 수리 시스템(NHEJ / HDR)이 마무리한다.
8. 최대 난제는 오프타깃과 전달. 이걸 풀려고 고정밀 변종, 니카아제, 염기·프라임 편집기가 계속 나온다.
솔직히 말하면, 크리스퍼가 특별한 건
"세상에서 제일 정교한 도구여서"가 아니야.
징크핑거 뉴클레아제나 TALEN도 특정 DNA를 자를 수 있었거든.
차이는 설계 비용이야.
기존 도구들은 표적을 바꾸려면 단백질 자체를 새로 설계·제작해야 했어.
몇 달, 수천 달러. 소수의 전문 연구실만 가능했지.
크리스퍼는? 20염기짜리 RNA 서열만 바꿔 주문하면 끝.
며칠, 수만 원. 대학원생 누구나 할 수 있어.
🔌 이게 바로 "플랫폼 기술"의 힘이야.
하드웨어를 바꾸지 않고 소프트웨어(gRNA)만 교체하면
전혀 다른 표적을 공략할 수 있는 구조.
범용 프로세서가 컴퓨팅을 대중화시킨 것과 똑같은 일이,
생명공학에서 벌어진 거지. 진입 장벽이 무너지면 혁신 속도는 지수적으로 빨라진다.
바이오 융합공학이 재밌는 이유가 여기 있어.
생물학은 메커니즘을 밝히고, 공학은 그걸 제어 가능한 시스템으로 바꾼다.
거기에 AI가 붙어서 gRNA 효율을 예측하고 오프타깃을 사전 스크리닝하지.
이제 한 분야만 알아선 최전선에 설 수 없는 시대야.
재능넷의 지식인의 숲에서는 이렇게 생물학·공학·데이터과학이 교차하는 지점을
시각화와 함께 계속 풀어나갈 거야. 다음엔 프라임 편집기의 pegRNA 설계 원리를 파볼까? 😎
오늘은 여기까지! 세균이 30억 년간 다듬어온 분자 기계를
우리가 빌려 쓰고 있다는 사실, 생각해보면 좀 뭉클하지 않아? 🧬✨

댓글 작성
이 글에 대한 여러분의 생각을 들려주세요
로그인이 필요합니다
댓글을 작성하려면 먼저 로그인해주세요.
댓글 0
지식인의 숲 - 지적 재산권 보호 고지
지적 재산권 보호 고지
- 저작권 및 소유권: 본 컨텐츠는 재능넷의 독점 AI 기술로 생성되었으며, 대한민국 저작권법 및 국제 저작권 협약에 의해 보호됩니다.
- AI 생성 컨텐츠의 법적 지위: 본 AI 생성 컨텐츠는 재능넷의 지적 창작물로 인정되며, 관련 법규에 따라 저작권 보호를 받습니다.
- 사용 제한: 재능넷의 명시적 서면 동의 없이 본 컨텐츠를 복제, 수정, 배포, 또는 상업적으로 활용하는 행위는 엄격히 금지됩니다.
- 데이터 수집 금지: 본 컨텐츠에 대한 무단 스크래핑, 크롤링, 및 자동화된 데이터 수집은 법적 제재의 대상이 됩니다.
- AI 학습 제한: 재능넷의 AI 생성 컨텐츠를 타 AI 모델 학습에 무단 사용하는 행위는 금지되며, 이는 지적 재산권 침해로 간주됩니다.
아직 댓글이 없습니다.