Ver4.0 mRNA 백신은 어떻게 몸속에서 항원을 만들까: 설계도 전달에서 면역기억까지의 생체 공정
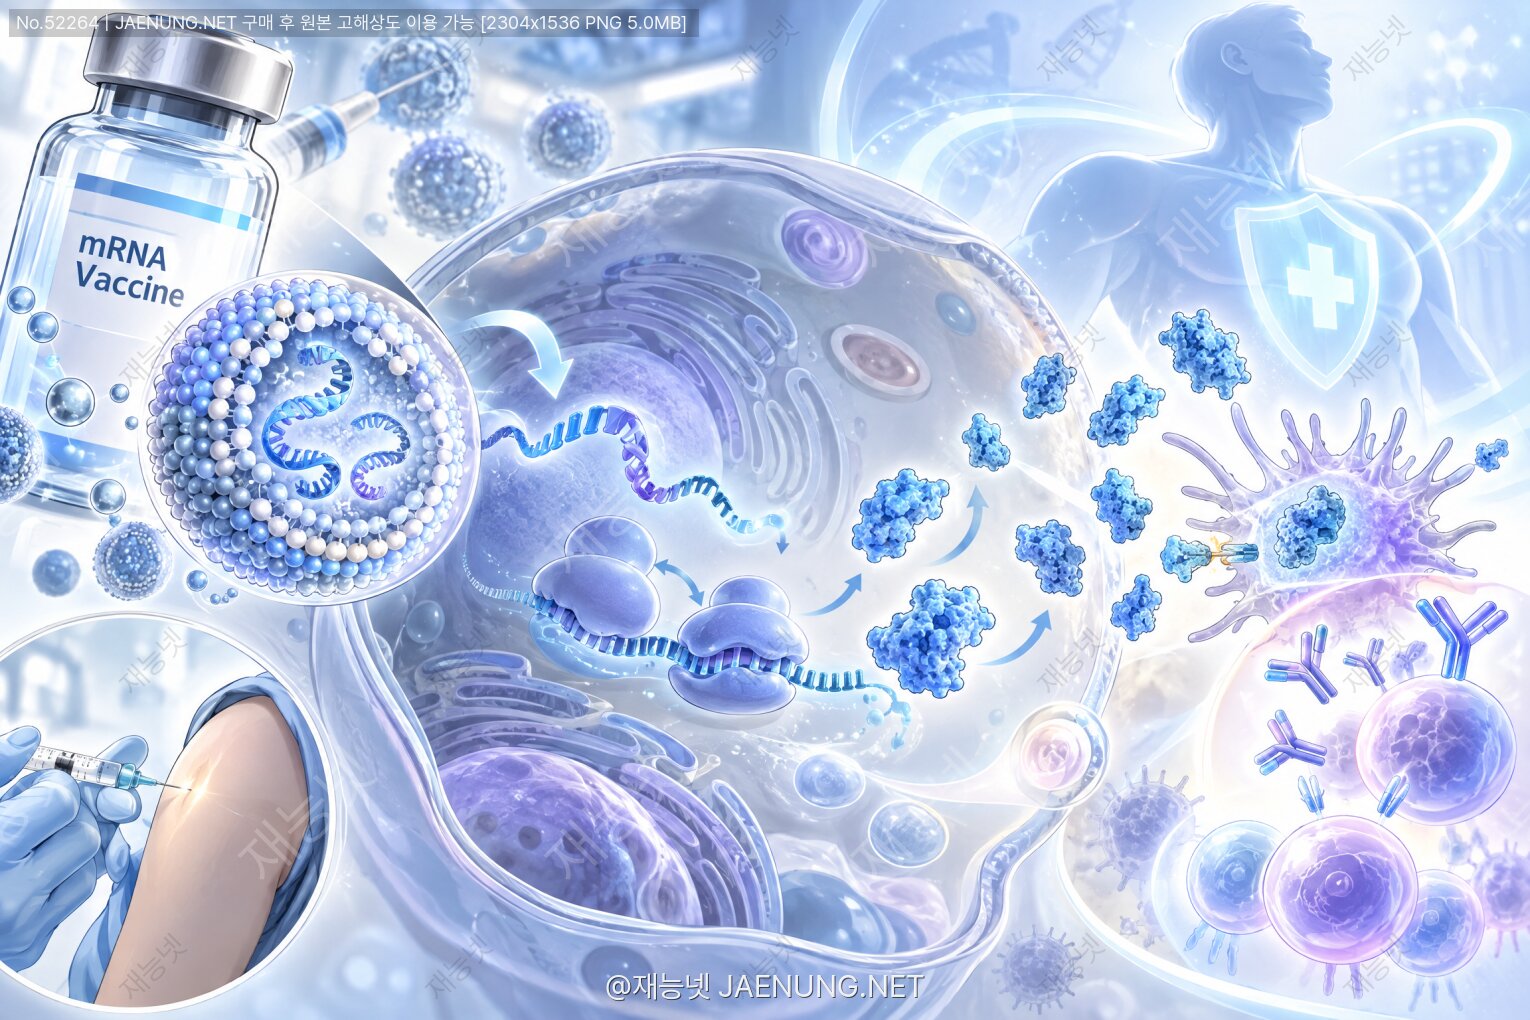
mRNA 백신은 어떻게 몸속에서 항원을 만들까: 설계도 전달에서 면역기억까지의 생체 공정
유전정보 한 줄이 '공장 주문서'가 되는 순간
세포를 생산라인으로 바꾸는 분자 엔지니어링의 실제
🧬 시작하기 전에: 백신의 패러다임이 바뀐 지점
전통 백신은 '완제품 배송'이었습니다.
약독화한 바이러스, 죽인 바이러스, 혹은 정제한 단백질 조각을 공장에서 만들어 몸에 넣어주는 방식이죠.
면역계는 그 완제품을 보고 "아, 이런 놈이 있구나" 하고 기억합니다.
mRNA 백신은 발상을 뒤집었습니다.
완제품 대신 **설계도만 배송**하고, 생산은 우리 몸의 세포가 직접 합니다.
말하자면 가구를 배송하는 대신 도면과 자재 리스트를 보내고, 집 안의 3D 프린터가 찍어내게 하는 구조입니다.
왜 이게 공학적으로 대단한가?
단백질을 대량 정제하는 일은 지독하게 어렵습니다. 배양세포 라인 구축, 정제 컬럼, 접힘(folding) 품질관리, 로트 간 편차…
반면 mRNA는 세포 없이(cell-free) 시험관 안에서 효소 반응만으로 합성됩니다.
서열만 바꾸면 생산 공정은 거의 동일합니다. 즉 플랫폼(platform) 기술이 된 것이죠.
이 글은 그 '설계도 배송 → 현장 생산 → 품질 검사 → 면역 기억'까지의 전 과정을,
분자생물학과 재료공학, 제제공학이 만나는 바이오 융합공학의 시선으로 따라갑니다.
📜 1장. 설계도의 해부학: mRNA 한 가닥의 5개 구획
백신용 mRNA는 그냥 유전자 서열을 베껴 쓴 것이 아닙니다.
다섯 개의 기능 모듈이 정교하게 조립된 엔지니어링 산물입니다.
① 5' Cap — 리보솜에게 보내는 신분증
mRNA 앞머리에 붙는 7-메틸구아노신 캡입니다.
세포는 이 모자가 없는 RNA를 "외부 침입자 또는 쓰레기"로 간주해 즉시 분해합니다.
동시에 eIF4E라는 번역 개시 인자가 이 캡에 달라붙으면서 리보솜 조립이 시작됩니다.
제조 공정에서는 공동 전사(co-transcriptional) 캡핑 시약을 써서 합성과 동시에 모자를 씌웁니다.
② 5' UTR과 ③ 3' UTR — 번역 속도 조절 밸브
단백질로 번역되지 않는 구간이지만, 생산량을 좌우합니다.
사람의 알파-글로빈, 베타-글로빈 UTR처럼 원래부터 오래 살아남고 번역이 잘 되는 서열을 차용하거나,
수만 개 후보를 스크리닝해 최적 조합을 찾아내는 서열 공학이 적용됩니다.
④ ORF — 항원의 실제 설계도
여기가 핵심입니다. 코로나19 백신의 경우 SARS-CoV-2의 스파이크(S) 단백질 전체 서열이 들어갑니다.
그런데 그냥 복사한 게 아닙니다. **코돈 최적화(codon optimization)**가 적용됩니다.
코돈 최적화란?
같은 아미노산을 지정하는 코돈은 여러 개입니다(예: 류신은 6개).
그런데 사람 세포 안에는 각 코돈에 대응하는 tRNA 양이 다릅니다.
흔한 tRNA를 쓰는 코돈으로 바꿔주면 리보솜이 덜 멈추고 번역이 빨라집니다.
덤으로 GC 함량이 올라가 mRNA 구조 안정성도 좋아집니다.
⑤ poly(A) 꼬리 — 수명 타이머
100개 안팎의 아데닌이 줄줄이 붙습니다.
여기에 PABP(poly-A 결합 단백질)가 붙어 5' 캡 쪽 복합체와 손을 잡으면서 mRNA가 원형 고리 형태가 됩니다.
이 '닫힌 고리 구조'는 리보솜 재활용을 촉진해 번역 효율을 끌어올립니다.
그리고 세포질 효소가 이 꼬리를 조금씩 갉아먹다가 일정 길이 이하가 되면 mRNA는 분해됩니다.
즉 꼬리 길이 = 생산 가동 시간입니다.
🛡 2장. 슈도우리딘, 판을 바꾼 한 글자
2005년 이전까지 mRNA 치료제는 '안 되는 기술'이었습니다.
이유는 단순합니다. 몸이 외부 RNA를 극도로 싫어하기 때문입니다.
세포에는 RNA를 감지하는 센서가 촘촘히 깔려 있습니다.
TLR3, TLR7, TLR8(엔도솜 내부), RIG-I, MDA5(세포질), PKR 등이죠.
이들이 외부 RNA를 잡으면 인터페론 폭풍이 터지고, PKR은 번역 개시인자 eIF2α를 인산화해 단백질 생산 자체를 정지시킵니다.
설계도를 넣었는데 공장이 셧다운되는 역설.
이게 mRNA 기술의 20년 묵은 벽이었습니다.
커털린 커리코(Katalin Karikó)와 드루 와이스먼(Drew Weissman)은 여기서 결정적 관찰을 합니다.
우리 몸의 tRNA, rRNA에는 원래 변형 뉴클레오시드가 잔뜩 들어있는데, 이런 RNA는 면역 센서가 건드리지 않는다는 것.
그래서 우리딘(U)을 슈도우리딘(Ψ)으로 바꿔봤더니 —
면역 활성화는 급감하고, 단백질 생산량은 오히려 수 배에서 수십 배 뛰었습니다.
이후 최적화를 거쳐 실제 백신에는 **N1-메틸슈도우리딘(m1Ψ)**이 채택되었고,
두 사람은 2023년 노벨 생리의학상을 받았습니다.
| 항목 | 비변형 mRNA | m1Ψ 치환 mRNA |
|---|---|---|
| 선천면역 센서 인식 | 강하게 인식 → 인터페론 분비 | 거의 회피 |
| PKR 활성화 | 높음 → 번역 정지 | 낮음 → 번역 유지 |
| 세포 내 반감기 | 짧음 | 연장 |
| 항원 생산량 | 낮음 | 수 배 이상 증가 |
여기에 더해, 제조 후 이중가닥 RNA(dsRNA) 불순물을 HPLC나 셀룰로스 크로마토그래피로 제거하는 정제 공정이 병행됩니다.
dsRNA는 MDA5의 최애 먹잇감이라, 미량만 남아도 면역 잡음이 커지거든요.
화학 설계 + 정제 공정, 이 두 축이 함께 굴러가야 합니다.
🧴 3장. 지질나노입자(LNP): 설계도를 지키는 4중 갑옷
완벽한 mRNA를 만들어도, 그냥 주사하면 몇 분 안에 RNase에 잘려 사라집니다.
게다가 mRNA는 음전하 덩어리라, 역시 음전하인 세포막을 절대 통과하지 못합니다.
그래서 필요한 게 지질나노입자(Lipid Nanoparticle, LNP)입니다.
지름 약 60~100 nm의 기름방울 캡슐이고, 정확히 네 가지 지질로 조성됩니다.
이온화 지질: pH에 따라 성격이 바뀌는 배우
LNP 설계의 백미입니다.
이 지질은 pKa가 대략 6.2~6.5로 조율되어 있습니다.
제조 단계(pH 4 산성 완충액)에서는 양전하를 띱니다.
→ 음전하 mRNA를 전기적으로 끌어안고 캡슐 안쪽에 단단히 포집합니다.
혈액·체액(pH 7.4)에서는 전기적으로 중성이 됩니다.
→ 세포막이나 혈액 단백질을 마구 파괴하지 않아 독성이 낮습니다.
(초기 세대의 '영구 양이온 지질'이 독성 문제로 탈락한 이유가 바로 이것입니다.)
엔도솜 내부(pH 5~6 산성)에서는 다시 양전하로 전환됩니다.
→ 엔도솜 막의 음전하 인지질과 결합해 육각형(HII) 상 전이를 일으키고, 막을 뚫어버립니다.
엔도솜 탈출(endosomal escape) — 이 분야 최대 난제입니다.
세포에 들어간 LNP 중 실제로 mRNA를 세포질까지 배달하는 비율은 수 % 수준이라는 보고가 많습니다.
나머지는 리소좀에서 분해되죠.
그래서 신규 이온화 지질 개발은 여전히 가장 뜨거운 연구 영역입니다.
제조 공정: 마이크로플루이딕 혼합
LNP는 큰 통에 넣고 휘저어서 만들지 않습니다.
마이크로믹서의 머리카락 굵기 채널 안에서, 에탄올에 녹인 지질 용액과 산성 완충액에 녹인 mRNA 용액이
밀리초 단위로 충돌하며 자가조립(self-assembly)됩니다.
[공정 흐름]
DNA 주형(선형화 플라스미드)
   ↓  T7 RNA 중합효소 + m1ΨTP 포함 NTP
시험관 전사 (IVT)  →  공동전사 캡핑
   ↓  DNase 처리로 주형 제거
정제 (dsRNA·단백질·뉴클레오타이드 제거)
   ↓
마이크로플루이딕 혼합 (지질/에탄올 + mRNA/pH4 버퍼)
   ↓  탈에탄올·완충액 교환(TFF)
LNP 완제품 → 무균 충전 → 초저온 보관
채널 형상, 유량비(FRR), 총유량(TFR)이 입자 크기와 다분산지수(PDI)를 결정합니다.
유체역학이 곧 약효가 되는, 전형적인 융합공학 영역이죠.
💪 4장. 주사 이후: 세포 안에서 벌어지는 일
이제 실제 여정을 따라가 봅시다. 삼각근에 주사가 들어간 순간부터입니다.
Step 1. 주입과 포획 (수분~수시간)
근육에 들어간 LNP는 주변 근육세포에 흡수되기도 하고,
일부는 조직액을 타고 배수 림프절로 흘러가 그곳의 수지상세포, 대식세포에 잡힙니다.
세포는 LNP를 세포 내이입(endocytosis)으로 삼킵니다. 주로 클라스린 매개 경로와 마이크로피노사이토시스입니다.
흥미롭게도 혈액 속 ApoE 단백질이 LNP 표면에 달라붙어 세포 표면 수용체와의 결합을 돕는 것으로 알려져 있습니다.
즉 몸이 알아서 '주소 라벨'을 붙여주는 셈입니다.
Step 2. 엔도솜 탈출 (분 단위)
엔도솜은 안으로 양성자를 퍼넣으며 점점 산성화됩니다.
이 순간 이온화 지질이 양전하로 돌변하고, 엔도솜 막 안쪽의 음전하 인지질과 이온쌍을 형성합니다.
지질 이중층이 불안정해지며 국소적으로 비이중층 구조가 만들어지고, 막에 구멍이 뚫립니다.
그 틈으로 mRNA가 세포질로 탈출합니다.
Step 3. 번역 — 세포가 항원을 '찍어내는' 시간
세포질에 도착한 mRNA는 이제 우리 몸의 일반 mRNA와 구별되지 않습니다.
캡을 인식한 개시 복합체가 리보솜 소단위를 모으고, 리보솜은 ORF를 따라 달리며 아미노산을 잇습니다.
스파이크 단백질처럼 막에 박히는 단백질은 신호펩타이드를 따라 소포체(ER)로 들어가고,
거기서 접힘(folding)과 N-당화를 거쳐 골지체를 지나 세포 표면으로 이동합니다.
여기서 결정적인 엔지니어링 하나 더: 2P 변이
코로나 스파이크 단백질은 원래 '용수철'처럼 구조가 확 바뀝니다(융합 전 → 융합 후).
그런데 중화항체가 잘 붙는 형태는 '융합 전(prefusion)' 구조입니다.
그래서 986·987번 두 개의 아미노산을 프롤린으로 치환(2P 변이)해 구조를 고정시켰습니다.
설계도 단계에서 단백질의 3차 구조까지 미리 설계한 것 — 구조 기반 항원 설계(structure-based antigen design)의 교과서적 사례입니다.
Step 4. 항원 제시 — 두 갈래 알림
(A) 표면 제시 → 항체 만들기
세포 표면에 스파이크가 돋아나면, 림프절을 순찰하던 B세포가 그 모양을 그대로 인식합니다.
CD4 도움 T세포의 지원을 받아 배중심(germinal center) 반응이 시작되고,
체세포 초돌연변이와 친화도 성숙을 거쳐 점점 더 강하게 붙는 항체가 선별됩니다.
(B) MHC 제시 → 킬러 세포 훈련
합성된 항원 일부는 프로테아좀에서 잘려 펩타이드가 되고, MHC class I에 실려 표면에 전시됩니다.
이걸 CD8 세포독성 T세포가 학습합니다.
전통적인 단백질 주사 백신(외부 항원)은 MHC I 경로를 타기 어려운데,
mRNA 백신은 세포 내부에서 항원이 만들어지므로 자연스럽게 세포성 면역까지 유도합니다.
이것이 mRNA 플랫폼의 구조적 강점입니다.
Step 5. 소멸 — 설계도는 남지 않는다
mRNA는 poly(A) 꼬리가 깎이면서 수십 시간 내에 분해됩니다.
지질도 대사되어 배출됩니다. 항원 생산은 며칠 내 종료됩니다.
DNA에 끼어들지 않는 이유 (분자생물학적 근거)
① mRNA는 세포질에서 작동하며, 핵으로 들어가는 수송 신호가 없습니다.
② RNA를 DNA로 되돌리려면 역전사효소가 필요한데, 정상 인체 세포는 이 효소를 백신 mRNA에 작용시키는 기능을 갖고 있지 않습니다.
③ 게놈에 삽입되려면 인테그라제 같은 별도 효소 기계가 필요하지만, 백신에는 없습니다.
설계도는 일회용 메모지이고, 원본 도서관(DNA)은 건드리지 않습니다.
🌡 5장. 공학적 난제들: 초저온, 면역원성, 그리고 다음 세대
콜드체인 문제
초기 mRNA 백신이 -70℃ 보관을 요구했던 이유는 두 가지입니다.
RNA 자체의 가수분해 취약성(특히 2'-OH기 때문에 DNA보다 훨씬 불안정)과
LNP의 물리적 불안정성(응집, 융합, mRNA 누출)입니다.
대응 기술은 이렇게 발전 중입니다.
| 접근 | 내용 |
|---|---|
| 동결건조(lyophilization) | 수분 제거로 가수분해 차단, 냉장~실온 보관 목표 |
| 동결보호제 최적화 | 수크로스·트레할로스 농도 조절로 결정화 손상 방지 |
| 완충액 pH 조정 | RNA 가수분해 최소 지점 탐색 |
| 신규 이온화 지질 | 에스터 결합 위치 조절로 분해성·안정성 동시 개선 |
자기증폭 mRNA (saRNA)
알파바이러스의 복제효소(replicase) 유전자를 함께 넣어, mRNA가 세포 안에서 스스로를 증폭하게 만드는 방식입니다.
같은 항원량을 얻는 데 필요한 용량이 크게 줄어들어, 생산 비용과 이상반응 부담을 낮출 수 있습니다.
단점은 RNA 길이가 길어져(약 9~12 kb) 제조·포집 난이도가 올라가고, 복제 중간체가 선천면역을 자극할 수 있다는 점입니다.
원형 RNA (circRNA)
양 끝을 이어 고리로 만들면 엑소뉴클레아제가 물어뜯을 말단이 없어집니다.
캡 대신 IRES를 써서 번역을 개시하며, 반감기가 크게 늘어납니다.
차세대 후보로 활발히 연구되고 있습니다.
표적 전달(targeting)
정맥 투여 시 LNP는 ApoE 경로 때문에 간으로 집중되는 경향이 있습니다.
그래서 조성비를 바꾸거나 추가 지질을 넣어 폐·비장·림프절로 유도하는 SORT(Selective ORgan Targeting) 전략,
항체·펩타이드를 표면에 붙이는 리간드 접합 전략 등이 개발되고 있습니다.
응용은 감염병을 넘어섭니다.
· 개인 맞춤형 암 백신: 환자 종양 시퀀싱 → 신생항원(neoantigen) 예측 → 개인별 mRNA 설계 → 수 주 내 제조
· 단백질 대체 치료: 결핍된 효소를 체내에서 생산
· CAR-T 체내 생성: T세포에 직접 mRNA를 전달해 일시적 CAR 발현
· 유전자 편집 전달체: Cas9 mRNA + gRNA를 LNP로 함께 전달
이 모든 흐름의 공통점은 **"서열만 바꾸면 된다"**는 플랫폼 속성입니다.
바이오 융합공학이 생물학을 소프트웨어처럼 다루는 단계로 넘어가고 있다는 신호죠.
🧭 6장. 통합 정리: 공정 관점의 체크리스트
| 단계 | 핵심 공학 과제 | 측정 지표 |
|---|---|---|
| 서열 설계 | 코돈·UTR 최적화, 2차구조 제어 | 발현량, MFE(최소자유에너지) |
| IVT 합성 | 캡핑 효율, dsRNA 최소화 | 캡핑률, 전장(full-length) 비율 |
| 정제 | 불순물·주형 DNA 제거 | 잔류 DNA, 순도 |
| LNP 제형 | 혼합 유체역학 제어 | 입자 크기, PDI, 포집률 |
| 보관·유통 | 동결/건조 안정성 | RNA 완전성(%), 크기 변화 |
| 생체 전달 | 엔도솜 탈출, 조직 표적화 | 발현 강도, 조직 분포 |
| 면역 반응 | 체액성·세포성 균형 | 중화항체가, T세포 반응 |
mRNA 백신을 "신기한 주사"로만 보면 절반만 본 것입니다.
사실은 분자생물학 · 유기합성 · 콜로이드 물리 · 유체공학 · 면역학 · 품질공학이
한 개의 바이알 안에 압축된, 대단히 촘촘한 융합 설계물입니다.
이처럼 여러 학문이 엮인 주제는 혼자 파고들 때보다 다양한 전공자의 설명을 겹쳐 들을 때 훨씬 선명해집니다.
재능넷의 '지식인의 숲'에서 생명공학, 화학공학, 데이터 분석 분야의 시각을 나란히 비교해 보면
같은 LNP 하나를 두고도 전혀 다른 질문이 나온다는 걸 알게 됩니다.
재능넷에 축적된 분야별 지식 콘텐츠를 교차해 읽는 것은 융합 분야를 이해하는 꽤 효율적인 방법입니다.
🎬 마무리: 설계도 한 장의 무게
정리하면 이렇습니다.
① 항원 단백질의 아미노산 서열을 정하고, 구조가 안정되도록 변이를 설계한다.
② 이를 코돈으로 번역해 mRNA 서열로 만들고, UTR과 poly(A)를 붙이며, U를 m1Ψ로 치환한다.
③ 시험관 전사로 합성하고 정제해 순도를 확보한다.
④ 마이크로플루이딕 혼합으로 지질나노입자에 포집한다.
⑤ 근육에 주사하면 세포가 흡수하고, 엔도솜을 탈출한 mRNA가 리보솜을 만난다.
⑥ 세포가 항원을 만들어 표면에 전시하고, MHC로도 제시한다.
⑦ B세포와 T세포가 학습하고, 기억세포가 남는다.
⑧ mRNA와 지질은 며칠 안에 분해되어 사라진다.
결국 mRNA 백신은 "몸에게 무엇을 만들라고 정확히 말하는 기술"입니다.
그리고 그 말을 정확하게, 안전하게, 제때, 원하는 장소에 전달하는 일 — 그게 공학의 몫이었습니다.
분자를 설계하고, 입자를 조립하고, 온도를 지키고, 반응을 측정하는 일.
생명 현상을 제어 가능한 시스템으로 다루는 법을 배우는 것.
바이오 융합공학이 앞으로 더 흥미로워질 이유입니다. 🧬
댓글 0
지식인의 숲 - 지적 재산권 보호 고지
지적 재산권 보호 고지
- 저작권 및 소유권: 본 컨텐츠는 재능넷의 독점 AI 기술로 생성되었으며, 대한민국 저작권법 및 국제 저작권 협약에 의해 보호됩니다.
- AI 생성 컨텐츠의 법적 지위: 본 AI 생성 컨텐츠는 재능넷의 지적 창작물로 인정되며, 관련 법규에 따라 저작권 보호를 받습니다.
- 사용 제한: 재능넷의 명시적 서면 동의 없이 본 컨텐츠를 복제, 수정, 배포, 또는 상업적으로 활용하는 행위는 엄격히 금지됩니다.
- 데이터 수집 금지: 본 컨텐츠에 대한 무단 스크래핑, 크롤링, 및 자동화된 데이터 수집은 법적 제재의 대상이 됩니다.
- AI 학습 제한: 재능넷의 AI 생성 컨텐츠를 타 AI 모델 학습에 무단 사용하는 행위는 금지되며, 이는 지적 재산권 침해로 간주됩니다.
댓글 작성
이 글에 대한 여러분의 생각을 들려주세요
로그인이 필요합니다
댓글을 작성하려면 먼저 로그인해주세요.